真核生物に最も近縁なアーキア、細胞の中は単純・外は複雑 ―突起を介した共生から、私たちの祖先像に迫る―


日本電子株式会社
国立研究開発法人産業技術総合研究所
大阪公立大学
大学共同利用機関法人自然科学研究機構 生命創成探究センター
大学共同利用機関法人自然科学研究機構 生理学研究所
国立大学法人京都大学
国立大学法人東海国立大学機構 名古屋大学
株式会社マリン・ワーク・ジャパン
1. 発表のポイント
- 複雑な構造を持つ生命(真核生物)に最も近縁なアーキア※1群「ヘイムダルアーキア」※2を、世界で初めて分離・培養することに成功した(図1)。これにより、生命がどのように複雑化していったのか、その進化過程を実験的に調べることが可能となった。
- 本アーキアの細胞内部は単純であった一方、外側には長い突起や膜小胞といった複雑な構造が形成されていた。また、突起を介して他の微生物に付着し、共生する姿が確認された。これらの結果は、生命の複雑さは、まず祖先となったアーキアの細胞外で発達し、他の微生物との共生・融合を通じて真核生物へと進化する過程で、内部化された可能性を示している。
- 今回培養したアーキアにとって酸素は有毒だが、真核生物の大部分は酸素を必要とする。本研究では、これらのアーキアが酸素に対する複数の解毒システムを持つことに加え、酸素を消費するバクテリアと共存させることで、培養開始時に微量の酸素が存在する条件でも生育できることがわかった。この結果は、多様な微生物との共生が、酸素を嫌うアーキアから酸素を必要とする真核生物への進化を支えた可能性を示している。
アーキア
古細菌とも呼ばれる。生物の主要系統の1つであり、バクテリア (細菌)、真核生物と共に全生物界を三分している。アーキアとバクテリアは細胞内のDNAを包む核膜を持たない原核生物で、基本的には単細胞の微生物である。私たちヒトを含む真核生物はアーキアの中から進化して誕生したと考えられている。
ヘイムダルアーキア (Heimdallarchaeia)
真核生物の起源に深く関わるとして注目されている「プロメテアーカエオータ門 (旧称: アスガルドアーキア)」に属するグループの1つ。ゲノム情報に基づく分子系統解析により、ヘイムダルアーキアの中から真核生物が誕生したと考えられている。
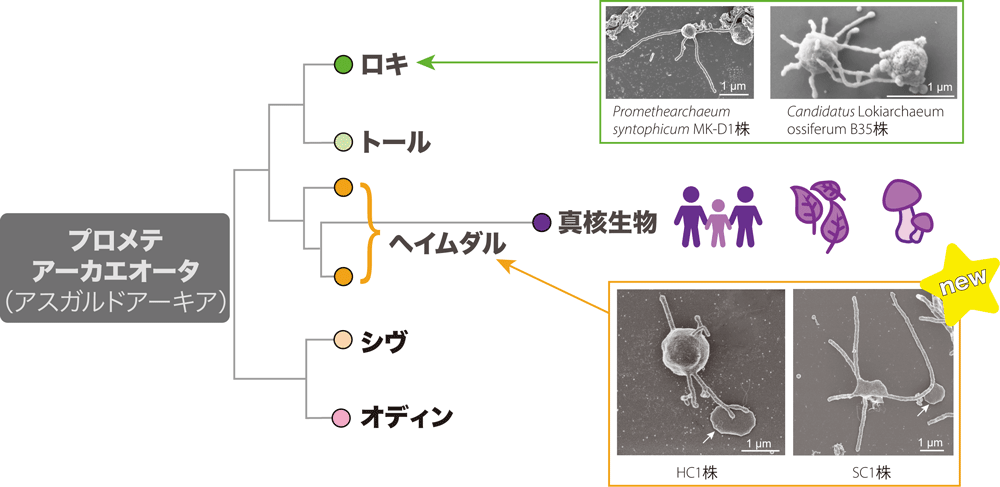
図1.プロメテアーカエオータと真核生物の進化的な関係、および培養株の電子顕微鏡写真
左の図は、真核生物の起源に深く関わるとして注目されているプロメテアーカエオータの各グループと真核生物の進化的な関係を示しています。本研究で分離したHC1株とSC1株が属するヘイムダルアーキアは、真核生物に最も近いグループです。真核生物は、ヘイムダルアーキアの中から進化して誕生したと考えられています。右の電子顕微鏡写真では、培養したアーキアが細胞の外側に長い突起を伸ばしている様子が見られます。白い矢印は、共生相手のメタン生成アーキアを示しています。(B35株の電子顕微鏡写真はRodriges-Oliveira et al., 2023. Nature(doi: 10.1038/s41586-022-05550-y)より転載)
2. 概要
国立研究開発法人海洋研究開発機構(理事長 河村知彦、以下「JAMSTEC」という。)生命地球科学研究部門の井町寛之上席研究員と延優(Masaru K. Nobu)主任研究員らは、私たちヒトを含む真核生物に最も近縁なアーキア群「ヘイムダルアーキア」に属する2株を、世界で初めて分離・培養することに成功しました。さらに、その細胞構造や生理・代謝を詳しく調べることで、真核生物の祖先となったアーキアの姿や生き方を、これまでで最も高い確度で描き出しました。
真核生物がどのように誕生したのかは、生命科学における大きな謎の1つです。現在では、アーキアの一群である「プロメテアーカエオータ門(旧称: アスガルドアーキア)」に属するアーキアが、ミトコンドリアの祖先となるバクテリアと共生・融合することで誕生したとする説が有力です。私たちは2020年に、深海の泥からこの門に属するアーキア(MK-D1株)の分離・培養に世界で初めて成功し、その細胞構造や代謝に基づいて、真核生物誕生の新しい仮説「E3モデル」を提案しました(2020年1月16日既報 文献1および2024年7月12日既報 文献2)。
その後、環境中の微生物ゲノムや進化的な関係を調べる研究が進み、この門の中でも「ヘイムダルアーキア」が真核生物に最も近縁であることが示されました。ヘイムダルアーキアは、すでに真核生物のような複雑な細胞内部構造(核や小胞体など、膜で囲まれた細胞内小器官)や酸素呼吸能を持つと予測する研究者もいましたが、実際の姿や生き方は不明でした。本研究では、戦略的な培養手法を用いてヘイムダルアーキアに属する2株を分離・培養し、これらの特徴を直接調べました。
その結果、培養株には真核生物のような複雑な細胞内構造は全く観察されず、細胞内部は単純でした。一方、細胞の外側には長い突起や膜小胞といった複雑な構造が形成され、突起を使って他の微生物に付着し、共生する姿が確認されました。また、培養株は無酸素環境で生きる嫌気性生物でしたが、そのうち1株は、酸素を消費するバクテリアを共存させると、培養開始時に微量の酸素が存在する環境でも生育できることが明らかになりました。
これらの結果は、真核生物の祖先となったアーキアが、単純な細胞内部構造を持ちながら、細胞の外側に長い突起などの複雑な構造を発達させ、他の微生物と積極的に共生していたことを示唆します。また、ミトコンドリアの祖先バクテリアとの初期の共生は低酸素環境で始まり、酸素の解毒がその成立を支えた可能性も示しています。つまり、嫌気性であったアーキアが、他の微生物との共生によって毒である酸素の影響を軽減しながら、やがてミトコンドリアの祖先バクテリアを細胞内に取り込み、その後、細胞内部を複雑化させることで、真核生物が誕生したと考えられます。
今回得られた培養株は、「真核生物の起源」を実験的に検証するための重要なモデル生物となります。今後、これらの培養株を用いて細胞構造や共生の仕組みを詳しく調べることで、単純なアーキアから複雑な真核生物が誕生した過程の解明が進むと期待されます。
本成果は「Nature」に、2026年10月28日(ロンドン時間)/10月29日(日本時間)付で掲載されました。
本研究は、日本学術振興会 科学研究費補助金(課題番号:19H01005, 22H04985, 23H00154, 23K20307, 23K27145, 24H00582, 25K02343, 26A302, 26H00428, 26H00429)、米国MooreおよびSimons財団助成金(GBMF9743)、公益財団法人発酵研究所助成金(L-2024-1-003)、関西スタートアップアカデミア・コアリション-GAPファンド(JPKSAC2026_24)、先端バイオイメージング支援プラットフォームABiS(22H04926)、科学技術振興機構 戦略的創造研究推進事業CREST(JPMJCR19S5)、生理学研究所共同研究利用(23NIPS201, 24NIPS201)、自然科学研究機構生命創成探究センター共同利用研究(22EXC601)、および国立研究開発法人日本医療研究開発機構 創薬等先端技術支援基盤プラットフォーム(JP24ama121005) の支援を受けて実施されました。
Eukaryotes’ closest relatives are internally simple syntrophic peptidotrophic archaea
(真核生物に最も近縁なアーキアは、単純な細胞内部構造を持ち、他の微生物と共生してペプチドを栄養源として生きる)
*両著者はこの研究に同等に貢献しています。
- 海洋研究開発機構 生命地球科学研究部門
- 日本電子株式会社 EM事業ユニット EMアプリケーション部
- 産業技術総合研究所 バイオものづくり研究センター
- 日本電子株式会社 EM事業ユニット EM第2技術開発部
- 海洋研究開発機構 物質地球科学研究部門
- 大阪公立大学 大学院理学研究科
- 海洋研究開発機構 高知コア研究所
- 自然科学研究機構 生理学研究所
- 自然科学研究機構 生命創成探究センター
- 京都大学 大学院農学研究科
- 名古屋大学 大学院理学研究科
- 株式会社マリン・ワーク・ジャパン 地球科学部
3. 背景
私たちヒトを含む真核生物が、どのようにして誕生したのかを理解することは、生物学における最も重要な課題の1つです。現在広く支持されている「細胞内共生説」では、海底に住んでいたあるアーキアが、ミトコンドリアの祖先となったバクテリアと共生し、最終的にこれを細胞内に取り込むことで、真核生物が誕生したと考えられています。近年、環境中の微生物のゲノム情報に基づく研究が進み、プロメテアーカエオータ門の中でも、「ヘイムダルアーキア」と呼ばれるグループから真核生物が誕生した可能性が高いと考えられるようになりました。
そこで重要になってくるのが、「真核生物の祖先となったアーキアは、どのような細胞だったのか」という問いです。真核生物の細胞内部には、核や小胞体など、膜で囲まれた複雑な構造があります。そのため、祖先となったアーキアも、ミトコンドリアの祖先バクテリアと共生する前から、ある程度複雑な細胞内構造を持っていたのではないかという仮説が提案されていました。その根拠の1つが、プロメテアーカエオータ門のアーキアのゲノムから、真核生物の複雑な細胞構造に関連する遺伝子が数多く見つかっていることです。
一方、これまで培養されたプロメテアーカエオータ門のアーキアであるPromethearchaeum syntrophicum MK-D1株やCandidatus Lokiarchaeum ossiferum B35株では、複雑な細胞内部構造は観察されていません。また、両株とも酸素のない環境で生きる嫌気性のアーキアであり、他の微生物との共生に依存して生きています。これらの結果から、真核生物の祖先となったアーキアも、単純な細胞内部を持つ嫌気性の微生物だった可能性が考えられていました。
しかし、MK-D1株やB35株は、真核生物に最も近縁なグループと考えられているヘイムダルアーキアには属していません。そのため、培養株で見られた特徴が、真核生物の祖先となったアーキアにも当てはまるのかは不明でした。
また、酸素をめぐっても重要な疑問が残されていました。これまで培養されたプロメテアーカエオータ門のアーキアはいずれも嫌気性ですが、ミトコンドリアの祖先バクテリアは酸素を利用していたと考えられています。酸素を嫌うアーキアと酸素を利用するバクテリアという正反対な性質を持つ2種類の微生物が、どのような環境で出会い、共生を成立させたのかは、真核生物の起源を理解する上で大きな謎でした。さらに、ヘイムダルアーキアの一部のゲノムには酸素呼吸に関連する遺伝子が見つかっていることから、「祖先アーキアは、真核生物のように酸素呼吸する生物だったのではないか」という仮説も提案されていました。
このように、真核生物の祖先となったアーキアの細胞内部は複雑だったのか、それとも単純だったのか、酸素を利用できたのか、そして他の微生物とどのように共生していたのかなど、多くの疑問が残されていました。これらの問いに答えるためには、真核生物に最も近縁なアーキア群であるヘイムダルアーキアを実際に分離・培養し、細胞の姿や生き方を直接調べる必要がありました。
4. 成果
―ヘイムダルアーキアの分離・培養―
私たちは以前、千葉県房総半島の南関東ガス田から湧き出す深部地下水に生息する微生物生態系について報告しました(2021年1月13日既報 文献3)。調査対象としたガス生産井戸KTG3では、メタンを含む嫌気的な古海水が間欠的に噴出しています。そのため、井戸の壁面に形成されたバイオフィルム (微生物が集まってできた膜上の構造物) は、断続的に空気 (酸素) にさらされているというユニークな環境にありました。微生物の種類を調べる指標となる16S rRNA遺伝子の配列を解析した結果、このバイオフィルムには、少数ながらヘイムダルアーキアが存在していることが分かりました。そこで、このバイオフィルムはヘイムダルアーキアと酸素の関係を調べるための有望な材料であると考え、培養を開始しました。
培養では、これまでの知見と仮説をもとに、培地や培養条件を段階的に変更しながら、ヘイムダルアーキアを選択的に増殖させることを試みました。まず、他の微生物が放出する代謝産物を「栄養のおこぼれ」として利用する方法で培養を始めました。これまでの研究から、プロメテアーカエオータ門のアーキアは、メタンを利用する微生物が細胞外に放出する物質 (アミノ酸やタンパク質など) を利用して生育する可能性が示されていました。そこで、採取した嫌気的地下水を濾過して基礎培地とし、メタンを加え約3ヶ月間培養しました。その結果、メタンを利用する微生物と共に、ヘイムダルアーキアを含むプロメテアーカエオータ門のアーキアが全体の約0.3%存在する培養系を得ることができました。
次に、栄養源をメタンからタンパク質に変更し、ヘイムダルアーキアを優先的に増殖させることを試みました。私たちのMK-D1株の先行研究から、このグループのアーキアの多くはタンパク質を分解して生育すると予測されていたためです。また、バクテリアの増殖を抑えてアーキアを選択的に増やすため、複数の抗生物質を組み合わせて使用しました。増殖の状況は定量PCRと16S rRNA遺伝子解析によって継続的に確認しました。
さらに、先行研究から予測されていた「ヘイムダルアーキアが微量の酸素が存在しても生存できる」という可能性をもとに、あえて培地に微量の酸素を残す条件を試しました。具体的には、酸素を除去するための還元剤を加えず、培地に数百nM (ナノモラー) 程度の溶存酸素が残る「微量酸素条件」で培養を行いました。この条件では、好気性バクテリアも増殖してしまいましたが、目的とするヘイムダルアーキアの割合を1.8%まで高めることができました。
その後は、還元剤や抗生物質の条件を調整するとともに、培地中の栄養源の種類や濃度を最適化しました。こうした培養条件の改良を積み重ねた結果、最初の試料採取から約3年を経て、ヘイムダルアーキアと共生相手であるMethanocalculus属メタン生成アーキアだけからなる「純粋な共培養系」として分離することに成功しました。
得られた株はMargulisarchaeum peptidiphilum HC1株と命名しました。属名は細胞内共生説を提唱したLynn Margulis氏にちなみ、種名はタンパク質を好んで利用する特徴に由来します。さらに、同様の培養戦略により、別種のヘイムダルアーキアであるSC1株もメタン生成アーキアとの純粋な共生系として分離することに成功しました。
―細胞内部は単純な構造、外部には複雑な構造―
分離したHC1株とSC1株の細胞形態を詳しく調べるため、様々な顕微鏡で観察しました。両株はいずれも球状(直径約1.3 および0.9 マイクロメートル (µm = 千分の1 mm)) であり、細胞の外側に枝分かれした長い突起を構築し、膜小胞を放出していることがわかりました(図1)。HC1株の突起の体積は、1細胞あたり約1.7立方マイクロメートルで、細胞本体の体積の約1.4倍に相当しました。この大きさから、突起はこのアーキアにとって重要な役割を担っていることが示唆されました。実際に、突起を介して共生相手のメタン生成アーキアに接触・付着する様子が観察されました(図1)。
真核生物は、異なる生物同士が共生し、最終的に一体化することで誕生したと考えられています。今回観察された、アーキアが突起を介して他の微生物と物理的に接触・付着する様子は、こうした共生がどのように始まったのかを考える上で重要な手がかりとなります。
さらに、並行して行われた共同研究から、この突起が細胞の運動にも関わることが明らかとなりました(Radler et al. 2026. Nature 文献4)。これらの結果から、突起は他の微生物との共生だけでなく、細胞自身の運動にも関わる、多機能な構造である可能性が示されました。
様々な電子顕微鏡を使って細胞内部を観察したところ、アクチンフィラメントやフェリチン様の構造物は見られたものの、膜で囲まれた小器官は確認されませんでした(図2)。ヘイムダルアーキアについては、真核生物のように小器官を持ち、細胞内部が複雑化しているのではないかという仮説も提案されていました。しかし今回の観察結果は、この仮説を支持せず、ヘイムダルアーキアの内部構造は単純であることを示しました。
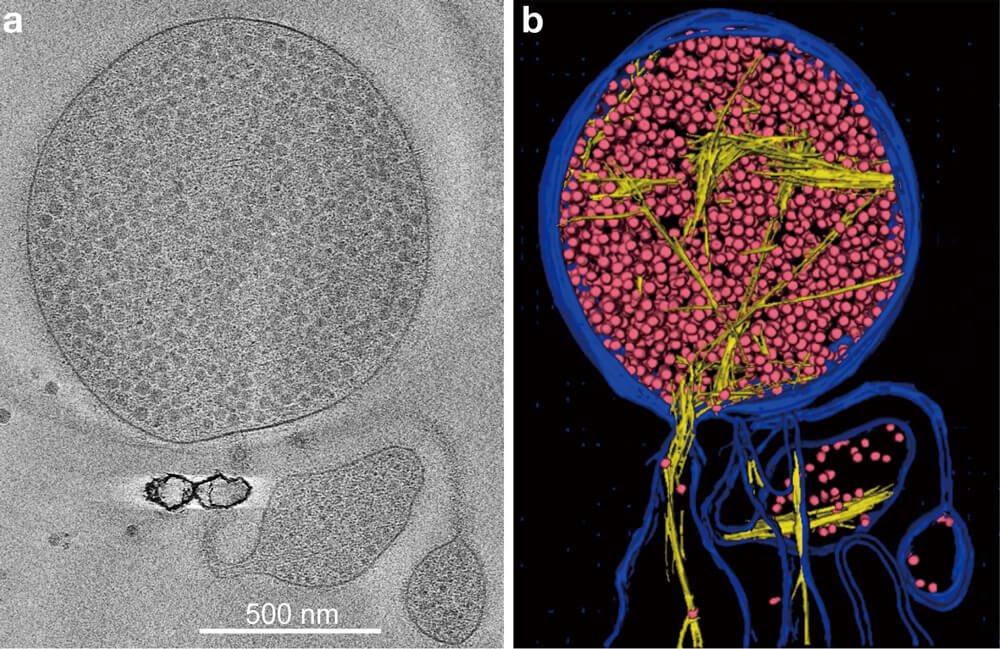
図2.ヘイムダルアーキアHC1株の細胞内部構造
細胞の内部構造を調べることができるクライオ電子顕微鏡を用いて得られた細胞内部の断面画像(a)と、同じ細胞の3次元再構成像(b)です。bでは、鉄の貯蔵に関わるフェリチンと考えられる顆粒を赤、細胞の形などに関わる繊維状の構造であるアクチンフィラメントを黄色、細胞膜を青で示しています。これらの顆粒やフィラメントは、膜で囲まれた細胞内小器官ではありません。
細胞内部が比較的単純である一方、外側に突起や膜小胞などの複雑な構造を形成するという特徴は、これまでに報告された培養株であるMK-D1株やB35株にも共通しています。このことから、こうした細胞形態は、プロメテアーカエオータ門で広く保たれている可能性が示されました。つまり、真核生物の祖先となったアーキアも、細胞内部がすでに複雑だったのではなく、こうした「内部は単純、外部は複雑」という特徴をもっていた可能性が高いと考えられます(図3)。
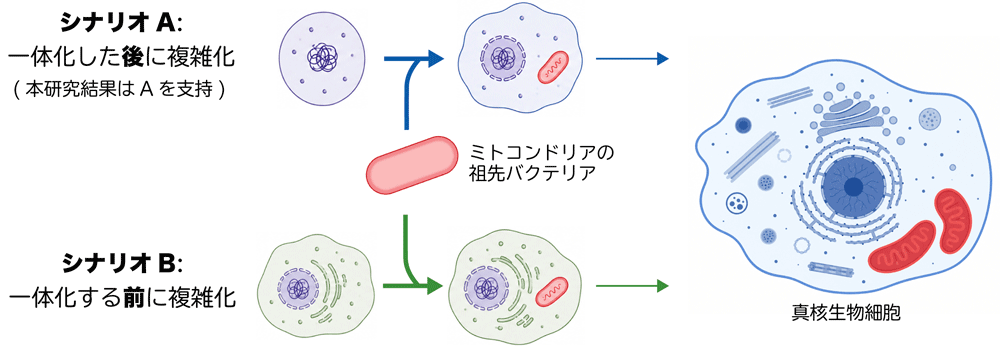
図3.細胞内部の複雑さはいつ生まれたのか?
真核生物は、祖先となるアーキアと、後にミトコンドリアになったバクテリアが一体化して誕生したと考えられています。細胞内部が複雑になった時期については、2つのシナリオがあります。シナリオAでは、祖先となるアーキアの内部は単純で、一体化した後に核などの複雑な構造が発達します。シナリオBでは、祖先となるアーキアが一体化する前から、ある程度の複雑な内部構造を持っていたと考えます。本研究で培養した、真核生物に最も近縁なアーキアには核などの構造が観察されなかったことから、研究結果はシナリオAを強く支持しています。(図を作成する一部作業に生成AIを使用)
―タンパク質と共生に依存した生き方―
続いて、これらのアーキア培養株が、どのような栄養を利用して増殖しているのかを調べました。その結果、HC1株とSC1株は、ともにタンパク質を唯一の栄養源として生育することが分かりました。さらに、ゲノム解析から、培養株だけでなくこの門に属する多くのアーキアが、タンパク質を分解し、その過程で水素あるいはギ酸を生成してエネルギーを得る代謝経路を持つことが示されました。生成された水素やギ酸は、共生相手であるメタン生成アーキアの栄養として渡されます。
また、ゲノム解析から、培養株を含むプロメテアーカエオータ門のアーキアは、細胞を作るために必要なアミノ酸の約半数を自ら合成できないと推定されました。このことは、これらのアーキアがタンパク質を栄養源として利用する理由の1つと考えられます。つまり、タンパク質を分解することで、自ら合成できないアミノ酸を外部から得ている可能性があります。興味深いことに、合成できないアミノ酸の組み合わせには、私たちヒトを含む多くの真核生物が食事から摂取する必要がある「必須アミノ酸」と似た傾向が見られました。この共通性は、アーキアから真核生物への進化と栄養の関係を考える上で、興味深い特徴です。
―酸素との関係―
次に、HC1株が酸素とどのように関わって生きているのかを明らかにするため、ゲノム解析、遺伝子およびタンパク質発現解析 (どの遺伝子あるいはどのタンパク質が作られているかを調べる解析)、培養実験を組み合わせて調べました。まず、タンパク質を分解して水素やギ酸を生成し、エネルギーを得る嫌気的な代謝に関わる酵素の多くが、酸素によって失活しにくいタイプであることが示されました。このことから、HC1株の代謝には、微量の酸素に対応できる能力を備えていると考えられました。
さらに注目すべき点として、HC1株のゲノム中には、酸素呼吸に関わることが知られているシトクロムbd型酸化酵素やシトクロムc酸化酵素の遺伝子が存在することが分かりました。しかし、ゲノム全体を詳細に調べても、これらの酵素を用いて酸素呼吸によりエネルギーを得るために必要な完全な電子伝達系の遺伝子群は確認されませんでした。電子伝達系とは、複数の分子の間で電子を受け渡し、エネルギーの獲得につなげる仕組みです。また、これらの酸化酵素は嫌気条件でも発現していましたが、その発現量は高くありませんでした。これらの結果から、酸化酵素は酸素呼吸によるエネルギー獲得ではなく、環境中に存在する微量の酸素を除去し、酸化ストレスから細胞を守るために働いている可能性が示されました。
HC1株は、酸素による細胞の損傷を防ぐ、ほかの仕組みも備えていました。カタラーゼ、スーパーオキシドディスムターゼ、各種ペルオキシダーゼなど、細胞を傷つける活性酸素を除去する酵素を幅広く保持していました。また、抗酸化物質である尿酸の生成に関わる酵素や、鉄を貯蔵して活性酸素の発生を抑えるフェリチンも高く発現していました。加えて、芳香族アミノ酸と呼ばれる種類のアミノ酸を分解する、酸素依存的な酵素も発現していました。このことから、タンパク質由来の芳香族アミノ酸を分解すると同時に、微量な酸素も除去している可能性も示されました。このようにHC1株は、単一の仕組みに頼るのではなく、複数の防御機構を組み合わせて、酸素に対応していると考えられます。
一方、培養実験では、培地から還元剤を抜いて数百nM程度の溶存酸素を残した条件と、1%の酸素を含むガスを与えた条件のいずれでも、HC1株の増殖は完全に阻害されました。しかし、酸素を消費するバクテリアを共存させると、培養開始時に微量の酸素が存在していても増殖できることがわかりました。これらの結果から、HC1株は基本的には酸素を利用しない嫌気性アーキアですが、自らの酸素に対する防御機構に加え、共存する微生物による酸素消費によって、生育可能な環境が作られたと考えられます。このような微生物との協力関係は、真核生物の祖先となったアーキアがミトコンドリアの祖先となるバクテリアと共生し、真核生物が誕生したという仮説を想起させるものです。
さらに、プロメテアーカエオータ門に属するアーキアが、酸素を利用する代謝と酸素を使わない代謝のどちらを基本としているのかを調べるため、好気性生物と嫌気性生物を区別することができる新しいゲノム解析手法を開発しました。この手法は、嫌気的な代謝と好気的な代謝を特徴づける酵素群である2-オキソ酸:フェレドキシン酸化還元酵素と2-オキソ酸脱水素酵素を指標にしたものです。解析の結果、HC1株のように酸素呼吸に関連する遺伝子を持つものも含め、プロメテアーカエオータ門のアーキアは、いずれも嫌気的な代謝を基本としていることが強く示されました。この結果は、真核生物の祖先となったアーキアも、基本的には酸素のない環境で生きる嫌気性生物であった可能性を支持します。
―まとめ―
本研究では、真核生物に最も近縁なアーキア群であるヘイムダルアーキアの2つの培養株を獲得し、その細胞構造、代謝、酸素との関係などを直接調べることができました。今回の培養株を、これまでに培養されていたMK-D1株やB35株と比較すると、細胞形態、タンパク質を利用する代謝、他の微生物との共栄養関係など、多くの共通点が見られました。加えて、プロメテアーカエオータ門全体を対象としたゲノム解析からも、これらの特徴が広く保存されていることが示されました。
これらの結果から、真核生物の祖先となったアーキアは、以下のような特徴を持っていたと考えられます。
- 酸素のない環境で生きる嫌気性生物でありながら、微量の酸素に対処する能力を持っていた。
- タンパク質を栄養源として利用していた。
- 他の微生物との共生を生活の重要な一部としていた。
- 細胞内部は単純で、膜に囲まれた小器官を持たない一方、外側には突起や膜小胞など複雑な構造を形成していた。
つまり、真核生物の祖先となったアーキアは、単純な細胞内部構造を持ちながら、細胞の外側に発達した複雑な構造 (突起) を使って他の微生物と密接に関わり、生きていたと考えられます。このような祖先アーキアの姿から考えると、細胞内部の複雑化は、ミトコンドリアの祖先バクテリアとの共生が始まった後に大きく進んだ可能性を支持します。また、今回の研究結果は、両者の初期の共生関係が低酸素環境で始まり、酸素の解毒がその成立を支えた可能性も示しています。すなわち、真核生物は、比較的単純な細胞内部構造を持つ嫌気性アーキアが、他の微生物との共生によって酸素の影響を軽減しながら、やがてミトコンドリアの祖先バクテリアを細胞内に取り込むことで、細胞構造や代謝を大きく変化させながら誕生したと考えられます。
5. 今後の展望
今回分離したHC1株およびSC1株は、これまでの培養株 (MK-D1株など) に比べて扱いやすいだけでなく、真核生物に最も近縁なアーキア群のヘイムダルアーキアに属しています。そのため、真核生物の起源を解明するための重要なモデル生物として活用できると期待されます。今後、これらの培養株を用いて、細胞の外側に形成される突起や膜小胞がどのような仕組みで形成され、どのような役割を果たしているのかを詳しく調べる予定です。また、他の微生物との共生がどのように成立し、維持されているのかも明らかにしていきます。こうした研究を通じて、単純なアーキアから複雑な真核細胞へと至る進化の過程を、実験的に検証できるようになると期待されます。
真核生物誕生の鍵を握る微生物「アーキア」の培養に成功 -生物学における大きな謎「真核生物の起源」の理解が大きく前進-
https://www.jamstec.go.jp/j/about/press_release/20200116/
「しんかい6500」で深海まで行って生物の新「界」を発見した話
https://www.jamstec.go.jp/j/pr/topics/column-20240712/
※本ページは現在メンテナンス中です。
茂原市周辺の地下深部ではアーキアがメタン生成を続けていることが明らかに
https://www.jamstec.go.jp/j/about/press_release/20210113/
Unexpected dynamics of ancient microbes discovered (Radler et al. 2026. Nature)
(真核生物に近縁なアーキアは運動する)
https://www.univie.ac.at/en/news/press-room/press-releases/detail/unexpected-dynamics-of-ancient-microbes-discovered
お問い合わせ先
(本研究について)
国立研究開発法人海洋研究開発機構 生命地球科学研究部門 海洋生命圏研究プログラム上席研究員 井町 寛之
主任研究員 延 優
(報道担当)
国立研究開発法人海洋研究開発機構 企画部門 事業推進部 報道室日本電子株式会社 経営戦略室 コーポレートコミュニケーション室 広報・ブランドグループ
国立研究開発法人産業技術総合研究所 ブランディング・広報部 報道室
大阪公立大学 広報課
大学共同利用機関法人自然科学研究機構 生命創成探究センター 研究力強化戦略室
大学共同利用機関法人自然科学研究機構 生理学研究所 研究力強化戦略室
国立大学法人京都大学 広報室 国際広報班
国立大学法人東海国立大学機構 名古屋大学 総務部広報課
株式会社マリン・ワーク・ジャパン 総務部